
[기획] 충돌은 실패가 아니었다…녹농균 집단이 미세미로 92%를 훑은 법
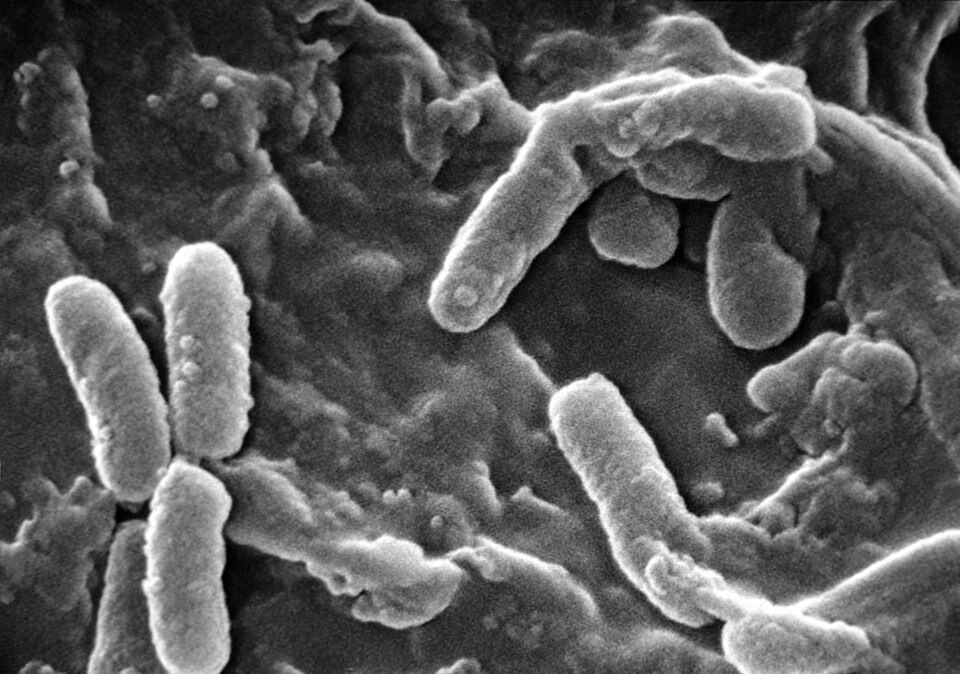
막다른 골목에서 벽에 부딪히면 사람은 돌아서 다른 길을 찾는다. 세균도 비슷한 결과를 낼 수 있었다. 녹농균(Pseudomonas aeruginosa)은 벽이나 다른 세포와의 충돌을 단순한 실패로 끝내지 않고, 진행 방향을 다시 정하는 신호로 이용했다. 다만 세균이 지도를 읽거나 출구를 판단했다는 뜻은 아니다. 눈앞의 접촉에 반응해 방향을 바꾸는 작은 행동이 거듭되면서 집단 전체의 ‘길찾기’처럼 보이는 결과가 나타난 것이다.
로잔연방공대(EPFL)와 캘리포니아대 샌디에이고(UC San Diego) 연구진이 유리 미세미로에서 녹농균을 4시간 관찰한 결과, 야생형 집단은 미로 면적의 평균 92%를 탐색했다. 충돌 뒤 거의 반전하지 않는 PilH 결손 변이주인 ΔpilH는 평균 65%에 머물렀다. 출구에 도달한 세포의 비율도 야생형 20%, 변이주 1%로 달랐다. 여기서 92%는 세포들이 훑은 ‘면적’이고 20%는 미로에 들어온 세포 가운데 출구까지 간 ‘비율’이다. 서로 다른 성적표인 만큼 92%와 1%를 직접 맞세워서는 안 된다.
혼자서는 과속했지만, 함께 모이자 정체됐다
이 결과가 흥미로운 까닭은 ΔpilH가 단독으로 움직일 때는 오히려 야생형보다 거의 2배 빠르고 직선적이었다는 데 있다. 빠르게 곧장 가는 능력만 보면 미로에서도 유리할 듯하다. 하지만 세포 밀도가 높아지자 상황이 뒤집혔다. 변이주들은 긴 줄과 소용돌이 모양으로 정렬된 채 모서리와 장애물 주변에 갇혔다. 줄을 잘 맞추는 것이 열린 길에서는 도움이 될 수 있지만, 복잡하고 붐비는 공간에서는 집단 전체를 한꺼번에 막히게 한 셈이다.
야생형은 다르게 움직였다. 세포끼리 자주 부딪히는 군락 내부에서는 방향 반전을 늘려 장거리 정렬을 깨뜨렸다. 반대로 열린 공간과 맞닿은 군락 가장자리에서는 다시 한 방향으로 정렬해 전진했다. 고밀도에서 ΔpilH의 정렬은 약 20개 이웃 규모까지 이어졌지만, 야생형과 과반전 변이주는 약 4개 규모에서 급격히 약해졌다. 충돌 뒤 돌아서는 행동은 개별 세포의 전진을 잠시 늦출 수 있어도, 집단이 한 방향으로 엉켜 붙는 것을 풀어 더 넓은 공간을 다시 탐색하게 했다.
이는 막힌 골목에서 범퍼가 닿을 때마다 후진해 새 방향을 고르는 단순 로봇과 비슷하다. 각 로봇은 미로 전체를 알지 못하지만, 충돌 때마다 움직임을 재설정하면 같은 곳에 계속 밀집할 가능성을 줄일 수 있다. 녹농균에서도 충돌은 국소적인 ‘재탐색 버튼’으로 작용한 것으로 해석된다.
선모를 붙였다 당기고, 세포의 앞뒤를 바꿨다
녹농균은 제4형 선모(type IV pili)라는 가느다란 운동기관을 표면에 붙인 뒤 수축시켜 몸을 끄는 트위칭 운동을 한다. 이웃 세포나 경계와 접촉하면 Pil–Chp 감각계가 반응하고, 반응조절자 PilG와 PilH가 선모의 배치와 세포 극성 전환을 조절한다. 극성이 바뀐다는 것은 세포가 움직임의 앞뒤를 바꾼다는 뜻이다. 연구진은 이처럼 충돌 뒤 수초 안에 진행 방향을 바꾸는 현상을 접촉유도 방향전환(contact-induced reversal)으로 분석했다.
PilH는 충돌을 처음 받아들이는 단독 수용체가 아니라 이 신호계 안에서 방향 반전에 관여하는 반응조절자다. 따라서 ΔpilH를 ‘충돌을 전혀 느끼지 못하는 세균’이라고 부르는 것은 정확하지 않다. 이 변이주는 충돌 뒤 극성 전환과 방향 반전이 거의 일어나지 않지만, 실제 움직임에는 회전과 벽면 추종, 확률적인 변화가 남아 있다.
연구진은 5초 간격의 현미경 영상과 형광 표지 단일세포 추적, 세포 분할 및 궤적 분석을 결합했다. 세포 주변 공간을 나눠 밀집도를 살피는 보로노이 분할과, 길쭉한 세포들이 어느 방향으로 나란히 놓이는지를 재는 네마틱 정렬 분석도 이용했다. 이어 스스로 움직이는 막대 입자 5,000개를 사용한 시뮬레이션과 유리 미세미로 실험으로 방향 반전이 집단 질서와 공간 탐색에 미치는 영향을 비교했다. 미로 정량 결과는 생물학적으로 독립된 실험 3회에서 얻었다.
별도의 EPFL 로고형 경쟁 미로에서 확인된 통로 폭은 10㎛였다. 세포의 대표 너비인 약 0.8㎛를 기준으로 하면 약 12개 세포가 나란히 놓일 폭이다. 머리카락 굵기를 약 70㎛로 잡으면 대략 7분의 1에 불과하다. 이런 좁은 길에서 세포끼리의 작은 충돌이 반복되면 개인의 속도보다 혼잡을 풀어내는 방식이 탐색 범위를 좌우할 수 있다.
새 발견은 ‘충돌 빈도와 집단 질서’의 연결
녹농균이 충돌 뒤 방향을 바꾸는 기계주성 자체는 같은 연구진이 2021년에 이미 보고했다. 2026년 10월 6일 온라인 공개된 이번 연구의 새 주장은 충돌 반전의 존재가 아니다. 충돌이 잦을수록 방향 반전이 달라지고, 이 피드백이 밀도에 따라 집단의 정렬을 깨거나 유지하면서 혼잡과 공간 탐색을 조절한다는 연결이다.
연구진은 반전이 지나치게 잦은 비교군으로 ΔpilG cpdA 이중 변이주를 사용했다. 또 세포 길이라는 교란요인을 확인하기 위해 길지만 반전할 수 있는 ΔcpdA와, 야생형에 가까운 길이지만 반전하지 않는 ΔpilH cyaB도 비교했다. ΔcpdA는 야생형과 비슷하게 퍼졌고 ΔpilH cyaB는 군집을 만들었다. 이는 방향 반전의 독립적인 역할을 뒷받침하지만, 후자가 원래 ΔpilH만큼 강한 장거리 정렬을 보이지 않았다는 점은 세포 모양도 결과에 함께 기여했음을 보여준다.
정족수 감지의 핵심 조절자인 LasR 결손주는 해당 조건에서 야생형과 비슷하게 퍼졌다. 적어도 LasR 경로가 관찰된 차이의 주된 설명은 아니라는 뜻이다. 그러나 이 결과만으로 모든 화학신호나 분비물 흔적, 세포 내부 신호의 관여까지 배제할 수는 없다.
유리 미로에서 감염 조직으로는 아직 건널 수 없다
가장 큰 한계는 ΔpilH가 방향 반전만 달라진 완벽한 스위치가 아니라는 점이다. 야생형보다 세포 종횡비가 약 30% 크고, 선모가 더 많으며, 이동속도도 빠르다. 추가 변이주와 시뮬레이션은 반전의 역할을 지지했지만 모든 생리적 차이를 제거하지는 못했다. 시뮬레이션 역시 실제 선모의 얽힘과 부착, 점액과의 상호작용을 구현하지 않고 세포 사이 작용을 주로 반발력으로 단순화했다. 실험과 모델의 충돌 반전 확률도 같은 방식으로 측정되지 않아 정량 예측보다는 동역학을 설명하는 도구에 가깝다.
평평한 유리와 아가로스 사이에 만든 미세미로는 토양이나 폐 점액, 상처와 숙주 조직을 재현하지 않는다. 실제 환경에는 3차원 구조와 유동, 면역세포, 다른 미생물이 함께 존재한다. 이번 연구는 사람이나 동물의 감염, 환자 시료, 항생제 치료를 시험하지 않았다. 따라서 이 원리가 감염력이나 바이오필름, 항생제 내성을 좌우하거나 치료 표적이 된다고 말할 증거는 아직 없다. 다른 세균에서는 방향 반전이 오히려 흐름과 응집 이동을 돕기도 해 모든 세균으로 일반화할 수도 없다.
그럼에도 이번 결과는 빠르게 직진하는 개체의 합이 반드시 잘 탐색하는 집단이 되지는 않는다는 점을 보여준다. 녹농균 집단에는 충돌을 피하는 능력보다, 충돌했을 때 정렬을 풀고 다시 흩어지는 능력이 더 유리한 순간이 있었다. 다만 그 결론은 현재로서는 유리 미세미로라는 통제된 세계 안에 머문다. 감염 조직이나 바이오필름에서도 같은 접촉 피드백이 작동하는지는 앞으로 확인해야 할 질문이다.
자료: 로잔연방공대(EPFL), 캘리포니아대 샌디에이고(UC San Diego), 미국 국립의학도서관